
¿Cómo explica la hipótesis fagotrófica el origen evolutivo de las células eucariotas?
Conozca cómo la hipótesis fagotrófica de Thomas Cavalier-Smith propone que la capacidad de ingerir presas impulsó la evolución de las células eucariotas.
En pocas palabras
- La hipótesis fagotrófica propone que la capacidad de ingerir presas desencadenó la eucariogénesis.
- Thomas Cavalier-Smith formuló esta teoría sugiriendo un origen autógeno para la mayoría de los rasgos eucariotas.
- El paso de una pared bacteriana rígida a una superficie flexible permitió el desarrollo de la fagocitosis y el citoesqueleto.
- Las actinobacterias se consideran el ancestro bacteriano más probable de los eucariontes en esta línea teórica.
¿Cómo explica la hipótesis fagotrófica el origen evolutivo de las células eucariotas?
En este artículo se analiza en detalle la hipótesis fagotrófica, una propuesta teórica planteada para explicar la eucariogénesis y el desarrollo de los principales componentes celulares mediante la capacidad de ingesta de presas.
¿Qué postula exactamente la hipótesis fagotrófica sobre el origen de los eucariontes?
La hipótesis fagotrófica postula que el surgimiento de la célula eucariota o eucariogénesis fue impulsado de manera directa por la capacidad de ingerir presas mediante la fagocitosis. Según esta perspectiva teórica, la transformación de la rígida pared bacteriana de peptidoglicano en una superficie celular flexible compuesta por glicoproteínas permitió por primera vez en la historia biológica la captura activa de partículas alimenticias sólidas y otras células.
Esta adquisición fundamental de la fagotrofia se encuentra estrechamente vinculada a la endocitosis, un proceso que desencadenó el desarrollo del sistema de endomembranas, la formación del citoesqueleto y la aparición de motores moleculares asociados. En última instancia, esta cadena de adaptaciones evolutivas condujo al establecimiento del núcleo celular y de los mecanismos de reproducción sexual, sugiriendo que la mayoría de los rasgos eucariotas poseen un origen autógeno.
¿Por qué se considera a las actinobacterias como el ancestro más probable de los eucariontes?
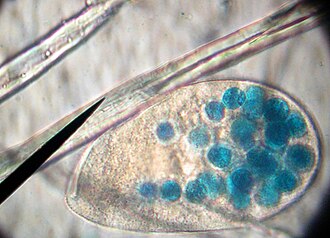
De acuerdo con los planteamientos filogenéticos de Thomas Cavalier-Smith, el antecesor inmediato de los eucariontes provendría de un grupo bacteriano específico, rechazando la idea tradicional de una fusión simbiótica directa entre arqueas y proteobacterias alfa en las etapas iniciales. En este contexto, una bacteria Gram-positiva heterótrofa y aerobia, concretamente una actinobacteria, se perfila como el candidato más probable debido a características bioquímicas y estructurales únicas.
Entre los indicios que respaldan esta filiación se encuentra el hecho de que las actinobacterias sintetizan compuestos complejos como el colesterol y son las únicas bacterias capaces de producir quitina. Asimismo, su maquinaria enzimática para la síntesis de ácidos grasos y la presencia de estructuras como las exosporas se interpretan como precursores evolutivos directos de los procesos característicos que posteriormente adoptaron las células eucariotas.
¿De qué manera se transformó el citoesqueleto durante esta transición evolutiva?
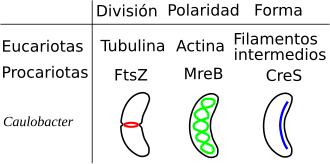
Para compensar la pérdida de la rígida pared celular bacteriana y mantener la cohesión estructural de la célula, los proto-eucariontes desarrollaron de forma paralela un citoesqueleto primitivo compuesto fundamentalmente por actina, miosina y tubulina. La proteína actina, encargada de formar los microfilamentos, comparte similitudes estructurales y de secuencia con la proteína MreB presente en los procariontes.
Por su parte, los motores moleculares bacterianos sufrieron modificaciones sustanciales para dar lugar a los elementos dinámicos del citoplasma eucariota. Mientras que la proteína FtsZ de las bacterias experimentó una triplicación para originar la tubulina, los sistemas de segregación cromosómica basados en proteínas como MukB y SMC evolucionaron hasta constituir los motores moleculares de miosina, dineína y cinesina necesarios para la división celular y el movimiento interno.
¿Cómo facilitó la fagocitosis la adquisición de las mitocondrias mediante endosimbiosis?
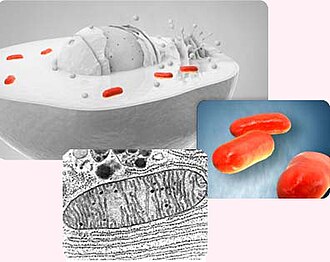
La instauración de la fagocitosis abrió de manera inmediata la posibilidad de que una célula ingerida lograra escapar de los mecanismos digestivos internos y estableciera una relación de endosimbiosis permanente con su hospedador. Dado que la pared celular de la gran mayoría de las bacterias actúa como una barrera impenetrable para la ingestión celular, el desarrollo previo de una superficie flexible fagotrófica fue un requisito esencial para este evento.
Una vez introducida una proteobacteria alfa dentro de una vacuola digestiva, la capacidad de adaptación permitió que esta entidad sobreviviera y evolucionara hacia el orgánulo conocido actualmente como mitocondria. Este evento endosimbiótico primario vino acompañado de una transferencia masiva de material genético hacia el organismo hospedador y de la sustitución casi neutral de enzimas metabólicas esenciales.
¿Cuál fue el papel del sistema de endomembranas y la exocitosis en este proceso?
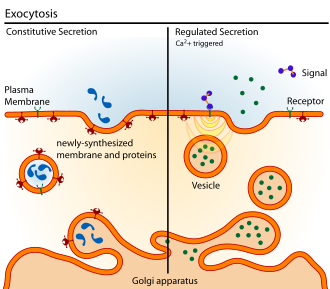
El perfeccionamiento gradual de la capacidad para ingerir presas requirió la creación de compartimentos estancos especializados para la digestión, dando origen al sistema de endomembranas y a los lisosomas. La teoría autógena establece que este complejo entramado surgió a partir de sucesivas invaginaciones de la membrana citoplasmática que eventually se independizaron funcionalmente.
Para regular este flujo vesicular y evitar procesos inútiles o dañinos, la célula desarrolló mecanismos selectivos mediante la participación de proteínas de cubierta vesicular como COP I, COP II y clatrina. Asimismo, la exocitosis permitió retornar las membranas a la superficie celular, contribuyendo de forma activa al crecimiento y mantenimiento de la integridad estructural de la célula eucariota.
¿Por qué se originó el núcleo celular y cómo se relaciona con la mitosis?
La envoltura nuclear surgió primordialmente como un mecanismo de protección altamente efectivo para salvaguardar la integridad del material genético frente a los potenciales daños mecánicos causados por los nuevos motores moleculares de miosina, dineína y cinesina durante el transporte vesicular y la citocinesis. La compactación del ADN mediante la incorporación de nuevas histonas complementó esta defensa estructural.
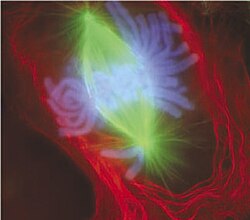
El origen del núcleo se halla íntimamente ligado a la evolución de la mitosis, un proceso complejo donde los microtúbulos traccionan de los cromosomas para lograr su segregación precisa. La transición desde los sistemas de división bacterianos hacia la maquinaria mitótica eucariota requirió una reorganización profunda del citoesqueleto y de los mecanismos de control genómico durante el ciclo celular.
Sources & Further Reading
- Cavalier-Smith, T. (2002). The phagotrophic origin of eukaryotes and phylogenetic classification of Protozoa. International Journal of Systematic and Evolutionary Microbiology, 52(2), 297-354. PMID: 11931142. DOI: 10.1099/00207713-52-2-297.
- Cavalier-Smith, T. (2002). The neomuran origin of archaebacteria, the negibacterial root of the universal tree and bacterial megaclassification. International Journal of Systematic and Evolutionary Microbiology, 52(1), 7-76.
- Cavalier-Smith, T. (2006). Cell evolution and Earth history: stasis and revolution. Philosophical Transactions of the Royal Society B: Biological Sciences, 361(1470), 969-1006. PMID: 16754610.
- Gitai, Z. (2005). The New Bacterial Cell Biology: Moving Parts and Subcellular Architecture. Cell, 120(5), 577-586. DOI: 10.1016/j.cell.2005.02.026.
Tu voto se guarda en este dispositivo.